martes, 16 de febrero de 2010

FOTOBIOLOGÍA

La Fotobiología es la ciencia que estudia el efecto de la radiación no ionizante sobre los sistemas vivos. Se hace una revisión de los conceptos básicos relativos a la luz, a la materia y la interacción de la radiación lumínica y materia que están en el campo de la biofísica.

FENÓMENOS FOTOQUÍMICOS.

La fotoquímica es el estudio de las transformaciones químicas provocadas o catalizadas por la emisión o absorción de luz visible o radiación ultravioleta. Una molécula en su estado fundamental (no excitada) puede absorber un quantum de energía lumínica, esto produce una transición electrónica y la molécula pasa a un estado de mayor energía o estado excitado. Una molécula excitada es más reactiva que una molécula en su estado fundamental.

El fenómeno fotoquímico precisa de fases principales:

1.Recepción de la energía luminosa.

2.Reacción química propiamente dicha.

Según se opere con una sustancia única o con un sistema de varios cuerpos en presencia, se realizará, bien una descomposición de la sustancia en sus elementos (fotólisis), bien una combinación de varios cuerpos en uno solo (fotosíntesis).

Leyes fundamentales.

1. Ley de absorción de Grotthus-Draper: Una radiación no puede provocar acción química más que si es absorbida por un cuerpo (o un sistema de cuerpos); si no, no puede haber transmisión de energía luminosa.

Es conveniente señalar que las radiaciones que constituyen el color de un cuerpo son justamente las no absorbidas. No tienen, por lo tanto, efecto sobre el mismo. Por el contrario las radiaciones complementarias de éste color son absorbidas y son susceptibles de acción. Por ejemplo, una sustancia de color verde emite el verde pero absorbe el rojo y el azul. No podrá ser descompuesta más que por estos dos últimos colores.

2. Ley energética: Para que una radiación luminosa actúe eficazmente, debe poseer una energía, por lo menos, igual a la necesaria para la transformación química.

Se sabe que la radiaciones poseen tanta más energía cuanto más cortas sean sus longitudes de onda (o más elevadas sean sus frecuencias). La energía transportada por un fotón viene dada por la expresión:

E= hv = (hc)/ phi

( c= velocidad de la luz)
en la que h es la constante de Plank, igual a 6,55x10⁻²⁷ ergios.

3. Ley de la equivalencia fotoquímica (o ley de Einstein): A cada fotón absorbido, corresponde una molécula descompuesta o combinada.
P= MOLÉCULAS DESCOMPUESTAS/ Nº DE FOTONES ABSORBIDOS.

Se sobreentiende que los fotones activos satisfacen la ley energética precedente.

Según esto se comprueba que prácticamente el número de fotones activos absorbidos en una reacción química, corresponde raramente al número de moléculas descompuestas con el número de fotones absorbidos, se obtiene un rendimiento cuántico que varía entre amplios límites, de 0,1 a 1000 (y más). Sólo algunas reacciones tienen un rendimiento teórico igual a la unidad.

A pesar de estas contradicciones, no se puede poner en duda la validez de la ley de Einstein, y la razón de las variaciones experimentales es simple:

a) Cuando la reacción química exige una aportación de energía (reacción endotérmica), como en el caso de los haluros de plata, r es todo lo más igual a 1. En general es más pequeño, como en la descomposición fotoquímica del clorhídrico gas, pues esta reacción es reversible.

Para descomponer el amoníaco NH3 en nitrógeno e hidrógeno, por los rayos ultravioletas, son precisos cuatro fotones por molécula (= 0,25.).

Según la longitud de onda, se puede modificar el equilibrio fotoquímica a un sentido u otro. Así, en la reacción reversible ácido maléico ácido fumárico donde con el ultravioleta = 313 mm existe 44 % de ácido maleico y 56 % de ácido fumárico, mientras que con una onda más corta = 200 mm, el ácido maleico se regenera, con un 75 % de ácido maleico y 25 % de ácido fumárico. En el primer caso, el rendimiento cuántico es de 0,03 mientras que se eleva a 0,1, por la reacción inversa.

b) Cuando las radiaciones absorbidas provocan primero una activación de la molécula, que reacciona a continuación sobre una segunda molécula neutra para dar productos de descomposición, según el esquema siguiente:

AB + hv = (AB)

(AB) + AB = 2A + 2B

el rendimiento cuántico es casi igual a 2.
FOTOSÍNTESIS DESDE EL PUNTO DE VISTA DE LOS PIGMENTOS Y CAPTACIÓN DE LA LUZ.
La fotosíntesis es la conversión de energía luminosa en energía química estable, siendo el adenosín trifosfato (ATP) la primera molécula en la que queda almacenada esa energía química.
Con posterioridad, el ATP se usa para sintetizar moléculas orgánicas de mayor estabilidad.

Los orgánulos citoplasmáticos encargados de la realización de la fotosíntesis son los cloroplastos, unas estructuras polimorfas y de color verde (esta coloración es debida a la presencia del pigmento clorofila) propias de las células vegetales. En el interior de estos orgánulos se halla una cámara que contiene un medio interno llamado estroma, que alberga diversos componentes, entre los que cabe destacar enzimas encargadas de la transformación del dióxido de carbono en materia orgánica y unos sáculos aplastados denominados tilacoides o lamelas, cuya membrana contiene pigmentos fotosintéticos. En términos medios, una célula foliar tiene entre cincuenta y sesenta cloroplastos en su interior.

La energía luminosa que absorbe la clorofila se transmite a los electrones externos de la molécula, los cuales escapan de la misma y producen una especie de corriente eléctrica en el interior del cloroplasto al incorporarse a la cadena de transporte de electrones. Esta energía puede ser empleada en la síntesis de ATP mediante la fotofosforilación, y en la síntesis de NADPH. Ambos compuestos son necesarios para la siguiente fase o Ciclo de Calvin, donde se sintetizarán los primeros azúcares que servirán para la producción de sacarosa y almidón. Los electrones que ceden las clorofilas son repuestos mediante la oxidación del H2O, proceso en el cual se genera el O2 que las plantas liberan a la atmósfera.

Existen dos variantes de fotofosforilación: acíclica y cíclica, según el tránsito que sigan los electrones a través de los fotosistemas. Las consecuencias de seguir un tipo u otro estriban principalmente en la producción o no de NADPH y en la liberación o no de O2.
Fotofosforilación acíclica.

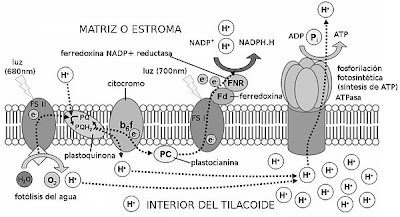
Este proceso permite la formación de ATP y la reducción de NADP+ a NADPH + H+, y necesita de la energía de la luz, como ya se ha dicho. Se realiza gracias a los llamados fotosistemas, que se encuentran en la membrana de los tilacoides (en los cloroplastos). Estos están formados por dos partes:

Antena, donde se agrupan los pigmentos antena, junto con proteínas, y cuya función es captar la energía de los fotones para transmitirla al pigmento diana; y el centro de reacción. Este está formado por proteínas y por pigmentos, encontrándose en él el llamado pigmento diana, que es aquel que recibe la energía de excitación de la antena, energía que sirve para excitar y liberar electrones. Aquí también se encuentra el primer dador de electrones, que repone los electrones al pigmento diana,
Primer aceptor, que recibe los electrones liberados.
Hay dos tipos de fotosistemas:

Fotosistema I, que se encuentra sobre todo en los tilacoides de estroma, y cuyo pigmento diana es la clorofila P700.

Fotosistema II, que se encuentra sobre todo en los grana y cuyo pigmento diana es la clorofila P680.

Proceso.

El proceso de la fase luminosa, supuesto para dos electrones, es el siguiente: Los fotones inciden sobre el fotosistema II, excitando y liberando dos electrones, que pasan al primer aceptor de electrones, la feofitina. Los electrones los repone el primer dador de electrones, el dador Z, con los electrones procedentes de la fotólisis del agua en el interior del tilacoide (la molécula de agua se divide en 2H+ + 2e- + 1/2O2). Los protones de la fotólisis se acumulan en el interior del tilacoide, y el oxígeno es liberado.

Los electrones pasan a una cadena de transporte de electrones, que invertirá su energía liberada en la síntesis de ATP. ¿Cómo? La teoría quimioosmótica nos lo explica de la siguiente manera: los electrones son cedidos a las plastoquinonas, las cuales captan también dos protones del estroma. Los electrones y los protones pasan al complejo de citocromos bf, que bombea los protones al interior del tilacoide. Se consigue así una gran concentración de protones en el tilacoide (entre éstos y los resultantes de la fotólisis del agua), que se compensa regresando al estroma a través de las proteínas ATP-sintasas, que invierten la energía del paso de los protones en sintetizar ATP. La síntesis de ATP en la fase fotoquímica se denomina fotofosforilación.

Los electrones de los citocromos pasan a la plastocianina, que los cede a su vez al fotosistema I. Con la energía de la luz, los electrones son de nuevo liberados y captados por el aceptor A0. De ahí pasan a través de una serie de filoquinonas hasta llegar a la ferredoxina. Ésta molécula los cede a la enzima NADP+-reductasa, que capta también dos protones del estroma. Con los dos protones y los dos electrones, reduce un NADP+ en NADPH + H+.

El balance final es: por cada molécula de agua (y por cada cuatro fotones) se forman media molécula de oxígeno, 1,3 moléculas de ATP, y un NADPH + H+.

Fase luminosa cíclica.

En la fase luminosa o fotoquímica cíclica interviene de forma exclusiva el fotosistema I, generándose un flujo o ciclo de electrones que en cada vuelta da lugar a síntesis de ATP. Al no intervenir el fotosistema II, no hay fotólisis del agua y, por ende, no se produce la reducción del NADP+ ni se desprende oxígeno. Únicamente se obtiene ATP.

El objetivo que tiene la fase cíclica tratada es el de subsanar el déficit de ATP obtenido en la fase acíclica para poder afrontar la fase oscura posterior.

Cuando se ilumina con luz de longitud de onda superior a 680 nm (lo que se llama rojo lejano) sólo se produce el proceso cíclico. Al incidir los fotones sobre el fotosistema I, la clorofila P700 libera los electrones que llegan a la ferredoxina, la cual los cede a un citocromo b6 y éste a la plastoquinona (PH), que capta dos protones y pasa a (PQH2). La plastoquinona reducida cede los dos electrones al citocromo f e introduce

Tiene lugar al mismo tiempo que la acíclica. En ella sólo interviene el fotosistema I. Los electrones liberados, después de llegar a la ferredoxina, pasan a las plastoquinonas, y siguen la cadena de transporte de electrones hasta regresar a la plastocianina y al fotosistema I. Por tanto, se genera ATP pero no NADPH. Sirve para compensar el hecho de que en la fotofosforilación acíclica no se genera suficiente ATP para la fase oscura.

BIBLIOGRAFÍA.

http://sisbib.unmsm.edu.pe/BVRevistas/dermatologia/v12_n2/fotobiologia_cutanea.htm
http://www.textoscientificos.com/fotografia/fotoquimica

Bioenergética Mitocondrial.

La fosforilación oxidativa mitocondrial engloba las reacciones que llevan a la síntesis de ATP utilizando la energía disponible tras la oxidación de sustratos en la cadena respiratoria. El acoplamiento de los dos procesos se realiza a través del gradiente de protones que es generado por la cadena respiratoria.

Las proteínas desacoplantes (abreviado "UCP", del inglés "uncoupling protein") son proteínas de la membrana interna mitocondrial cuya función biológica es la disipación controlada del gradiente de protones. Existe un gran número de procesos que parecen requerir de la participación de las UCPs. Así, este mecanismo disipador de energía es utilizado por los mamíferos para mantener la temperatura corporal cuando están expuestos al frío e incluso para quemar el exceso de calorías ingeridas en la dieta. De modo más reciente se ha descrito que las UCPs pueden jugar un papel importante en el control de la secreción de insulina o que su actividad reduce la producción de especies reactivas del oxígeno siendo, por tanto, un mecanismo de defensa frente al estrés oxidativo. Durante estos últimos años se ha puesto de manifiesto que los genes que codifican proteínas desacoplantes tienen una distribución muy amplia, habiéndose encontrado no sólo en animales sino también en plantas e incluso en organismos unicelulares. Esta amplia presencia sugiere que el desacoplamiento de la fosforilación oxidativa es una estrategia adoptada de modo general por los seres vivos para regular la eficiencia energética.

CADENA RESPIRATORIA.

La cadena de transporte de electrones es una serie de transportadores de electrones que se encuentran en la membrana plasmática de bacterias, en la membrana interna mitocondrial o en las membranas tilacoidales, que median reacciones bioquímicas que producen adenosina trifosfato (ATP), que es el compuesto energético que utilizan los seres vivos. Sólo dos fuentes de energía son utilizadas por los organismos vivos: reacciones de óxido-reducción (redox) y la luz solar (fotosíntesis). Los organismos que utilizan las reacciones redox para producir ATP se les conoce con el nombre de quimioautótrofos, mientras que los que utilizan la luz solar para tal evento se les conoce por el nombre de fotoautótrofos. Ambos tipos de organismos utilizan sus cadenas de transporte de electrones para convertir la energía en ATP.

Se han identificado cuatro complejos enzimáticos unidos a membrana interna mitocondrial. Tres de ellos son complejos transmembrana, que están embebidos en la membrana interna, mientras que el otro esta asociado a membrana. Los tres complejos transmembrana tienen la capacidad de actuar como bombas de protones. El flujo de electrones global se esquematiza de la siguiente forma:

NADH → Complejo I → Q → Complejo III → Citocromo c → Complejo IV → O2

Complejo II

Complejo I.

El "complejo I" o NADH deshidrogenasa o NADH:ubiquinona oxidoreductasa (EC 1.6.5.3) capta dos electrones del NADH y los transfiere a un transportador liposoluble denominado ubiquinona (Q). El producto reducido, que se conoce con el nombre de ubiquinol (QH2) puede difundir libremente por la membrana. Al mismo tiempo el Complejo I transloca cuatro protones a través de membrana, produciendo un gradiente de protones.

El NADH es oxidado a NAD+, reduciendo al FMN a FMNH2 en un único paso que implica a dos electrones. El siguiente transportador de electrones es un centro Fe-S que sólo puede aceptar un electrón y trasferirlo a la ubiquinona generando una forma reducida denominada semiquinona. Esta semiquinona vuelve a ser reducido con el otro electrón que quedaba generando el ubiquinol, QH2. Durante este proceso, cuatro protones son translocados a través de la membrana interna mitocondrial, desde la matriz hacia el espacio intermembrana.

Complejo II.

El "Complejo II" o Succinato deshidrogenasa, no es un bomba de protones. Además es la única enzima del ciclo de Krebs asociado a membrana. Este complejo dona electrones a la ubiquinona desde el succinato y los transfiere vía FAD a la ubiquinona.

Complejo III.

El "complejo III" o Complejo citocromo bc1, obtiene dos electrones desde QH2 y se los transfiere a dos moléculas de citocromo c, que es un transportador de electrones hidrosoluble que se encuentra en el espacio intermembrana de la mitocondria. Al mismo tiempo, transloca dos protones a través de la membrana por los dos electrones transportados desde el ubiquinol.

Complejo IV.

El complejo IV o Citocromo c oxidasa, capta cuatro electrones de las cuatro moléculas de citocromo c y se transfieren al oxígeno (O2), para producir dos moléculas de agua (H2O). Al mismo tiempo se translocan cuatro protones al espacio intermembrana, por los cuatro electrones. Además "desaparecen" de la matriz 4 protones que forman parte del H2O.

Acoplamiento con la fosforilización oxidativa.

La hipótesis del acoplamiento quimiosmótico, lo que el valió el premio Nobel de química a Peter D. Mitchell, explica que la cadena de transporte de electrones y la fosforilación oxidativa están acopladas por el gradiente de protones. El flujo de protones crea un gradiente de pH y un gradiente electroquímico. Este gradiente de protones es usado por la ATP sintasa para formar ATP vía la fosforilación oxidativa. La ATP sintasa actúa como un canal de iones que "devuelve" los protones a la matriz mitocondrial. Durante esta vuelta, la energía libre de Gibbs producida durante la generación de las formas oxidadas de los transportadores de electrones es liberada. Esta energía es utilizada por la síntesis de ATP, catalizada por el componente F1 del complejo FOF1 ATP sintasa.
BIBLIOGRAFÍA.

http://www.cib.csic.es/es/grupo.php?idgrupo=39
http://es.wikipedia.org/wiki/Cadena_de_transporte_de_electrones

domingo, 31 de enero de 2010

Reacciones redox.

Las células poseen un circuito biológico análogo al motor, con compuestos relativamente reducidos como la glucosa como fuente de electrones. Como la glucosa es oxidada enzimáticamente, el flujo de electrones migra espontáneamente a través de una serie de intermediarios acarreadores de electrones a otras especies como el O2. Este flujo de electrones es exergónico porque el O2 posee una elevada afinidad por los electrones comparada con los intermediarios acarreadores de electrones. La fuerza electromotriz (FEM) resultante provee de energía a una variedad de transductores moleculares de energía (enzimas y otras proteínas) que hacen trabajo biológico. En la mitocondria, por ejemplo, existen enzimas membranales que acoplan el flujo de electrones a la producción de una diferencia transmembranal de pH, lo cual es acompañando por trabajo osmótico y eléctrico. El gradiente de protones es energía potencial, a menudo denominada fuerza protón-motriz por analogía con la FEM. Por otra parte la enzima ATPsintasa ubicada en la membrana interna mitocondrial, utiliza esta fuerza protón-motriz para hacer trabajo químico, es decir, la síntesis de ATP a partir de ADP y Pi a medida que los protones migran espontáneamente a través de la membrana.

Las oxidaciones y reducciones ocurren de manera concertada, pero es conveniente para describir la transferencia de electrones considerarlas en mitades, una de oxidación y otra de reducción. Por ejemplo la oxidación del ion ferroso por el ion cúprico

Fe2+ + Cu2+ = Fe3+ + Cu+

Puede ser descrita en términos de dos mitades:

(1) Fe2+ =Fe3+ e-

(2) Cu2+ + e- = Cu+

Las reacciones de óxido-reducción, se llevan a cabo con la transferencia de electrones desde un donador electrónico (reductor) a un aceptor electrónico (oxidante). El catión fierro puede existir como ferroso (Fe2+) o como férrico (Fe3+) funcionando como un par de óxido-reducción o par redox, exactamente como un par ácido-base (donador de protones Û aceptor de protones + H+).
Para que exista una reacción redox, en el sistema debe haber un elemento que ceda electrones y otro que los acepte:

El agente reductor es aquel elemento químico que suministra electrones de su estructura química al medio, aumentando su estado de oxidación, es decir, oxidándose.
El agente oxidante es el elemento químico que tiende a captar esos electrones, quedando con un estado de oxidación inferior al que tenía, es decir, reducido.

OXIDACIÓN Y REDUCCIÓN.
La oxidación es una reacción química donde un compuesto cede electrones, y por lo tanto aumenta su estado de oxidación.

Este cambio no significa necesariamente un intercambio de electrones. Suponer esto -que es un error común- implica que todos los compuestos formados mediante un proceso redox son iónicos, puesto que es en éstos compuestos donde sí se da un enlace iónico, producto de la transferencia de electrones.

Por ejemplo, en la reacción de formación del cloruro de hidrógeno a partir de los gases dihidrógeno y dicloruro, se da un proceso redox y sin embargo se forma un compuesto covalente.
Estas dos reacciones siempre se dan juntas, es decir, cuando una sustancia se oxida, siempre es por la acción de otra que se reduce. Una cede electrones y la otra los acepta. Por esta razón, se prefiere el término general de reacciones redox.

La propia vida es un fenómeno redox. El oxígeno es el mejor oxidante que existe debido a que la molécula es poco reactiva (por su doble enlace) y sin embargo es muy electronegativo, casi como el flúor.

La sustancia más oxidante que existe es el catión KrF+ porque fácilmente forma Kr y F+. Entre otras, existen el KMnO4, el Cr2O7, el agua oxigenada (H2O2), el ácido nítrico (HNO3), los hipohalitos y los halatos (por ejemplo el hipoclorito sódico (NaClO) muy oxidante en medio alcalino y el bromato potásico (KBrO3)). El ozono (O3) es un oxidante muy enérgico:

Br− + O3 → BrO3−

El nombre de "oxidación" proviene de que en la mayoría de estas reacciones, la transferencia de electrones se da mediante la adquisición de átomos de oxígeno (cesión de electrones) o viceversa. Sin embargo, la oxidación y la reducción puede darse sin que haya intercambio de oxígeno de por medio, por ejemplo, la oxidación de yoduro de sodio a yodo mediante la reducción de cloro a cloruro de sodio:

2 NaI + Cl2 → I2 + 2 NaCl

Esta puede desglosarse en sus dos semirreacciones correspondientes:

2I− → I2 + 2 e−
Cl2 + 2 e− → 2 Cl

Reducción. En química, reducción es el proceso electroquímico por el cual un átomo o ión gana electrones. Implica la disminución de su estado de oxidación. Este proceso es contrario al de oxidación.

Cuando un ión o un átomo se reduce:

Gana electrones.
Actúa como agente oxidante.
Es reducido por un agente reductor.
Disminuye su estado o número de oxidación.

Ejemplo

El ión hierro (III) puede ser reducido a hierro (II):

Fe3+ + e− → Fe2+

En química orgánica, la disminución de enlaces de átomos de oxígeno a átomos de carbono o el aumento de enlaces de hidrógeno a átomos de carbono se interpreta como una reducción. Por ejemplo:

CH≡CH + H2 → CH2=CH2 (el etino se reduce para dar eteno).
CH3–CHO + H2 → CH3–CH2OH (el etanal se reduce a etanol).

POTENCIAL REDOX.
El potencial redox es una medida de la actividad de los electrones. Está relacionado con el pH y con el contenido de oxígeno. Es análogo al pH ya que el pH mide la actividad de protones y el potencial redox mide la de los electrones.

El potencial redox se calcula como:

Eh = 1, 234 - 0,058 pH + 0,0145 log (10) Po, siendo Po la presión parcial de oxígeno expresada en atmósferas.

En los potenciales oxidantes la materia tiende a oxidarse y descomponerse y en reductores tiende a reducirse. La sustancia con potencial de reducción más negativo es la que se oxida. Por ello es importante conocer los valores normales de los potenciales redox. Hay distintos medios acuáticos debido a ésto: el agua ácida de minas es muy oxidante, el agua atmosférica,, el agua de río y la de mar también, en un punto intermedio están las aguas pantanosas y el agua subterránea, y como las más reductoras están el agua de suelos inundados y el agua en contacto con sedimentos marinos reductores.

RADICALES LIBRES.

En química, un radical (antes referido como radical libre) es una especie química (orgánica o inorgánica), en general extremadamente inestable y, por tanto, con gran poder reactivo por poseer un electrón desapareado o impar.[1] No se debe confundir con un grupo sustituyente, como un grupo alquilo, que son partes de una molécula, sin existencia aislada.

Poseen existencia independiente aunque tengan vidas medias muy breves, por lo que se pueden sintetizar en el laboratorio, se pueden formar en la atmósfera por radiación, y también se forman en los organismos vivos (incluido el cuerpo humano) por el contacto con el oxígeno y actúan alterando las membranas celulares y atacando el material genético de las células, como el ADN.

Los radicales tienen una configuración electrónica de capas abiertas por lo que llevan al menos un electrón desapareado que es muy susceptible de crear un enlace con otro átomo o átomos de una molécula. Desempeñan una función importante en la combustión, en la polimerización, en la química atmosférica, dentro de las células y en otros procesos químicos.

Para escribir las ecuaciones químicas, los radicales frecuentemente se escriben poniendo un punto (que indica el electrón impar) situado inmediatamente a la derecha del símbolo atómico o de la fórmula molecular como:

H2 + hν → 2 H· (Esto se deriva de la notación de Lewis).

Los radicales pueden ser:

monoatómicos, como el radical cloro Cl·, el radical bromo Br·, o el radical hidrógeno H·, que son simplemente átomos o iones con un número impar de electrones.
poliatómicos, formados por más de un átomo, como el radical metilo, CH3·

Los radicales se producen en la respiración con la presencia de oxígeno que aunque es imprescindible para la vida celular de nuestro organismo, también induce la formación de éstas moléculas reactivas, que provocan a lo largo de la vida efectos negativos para la salud debido a su capacidad de alterar el ADN (los genes), las proteínas y los lípidos o grasas ("oxidación"). En nuestro cuerpo existen células que se renuevan continuamente como las células de la piel, del intestino, y el hígado, y otras sin capacidad de renovación como las neuronas. En el transcurso de los años, los radicales libres pueden producir una alteración genética sobre las células que se dividen continuamente contribuyendo a aumentar el riesgo de cáncer por mutaciones genéticas o bien, disminuyen la funcionalidad de las células que no se dividen tanto, disminuyendo el número de mitocondrias, que es característico del envejecimiento.

Las situaciones que aumentan la producción de radicales libres son:

La contaminación ambiental.
El tabaquismo.
Las dietas ricas en grasas.
Exposición excesiva a las radiaciones solares.
La ingesta de aceites "vegetales" que fueron refinados, ya que estos contienen radicales libres al ser sometidos a altas temperaturas.

http://laguna.fmedic.unam.mx/~evazquez/0403/reacciones%20redox.html
http://es.wikipedia.org/wiki/Reducci%C3%B3n-oxidaci%C3%B3n#Oxidaci.C3.B3n
http://www.cienciaybiologia.com/ecologia/redox.htm

http://es.wikipedia.org/wiki/Radical_(qu%C3%ADmica)

martes, 26 de enero de 2010

ATP


El trifosfato de adenosina (ATP) es un nucleótido fundamental en la obtención de energía celular. Está formado por una base nitrogenada (adenina) unida al carbono 1 de un azúcar de tipo pentosa, la ribosa, que en su carbono 5 tiene enlazados tres grupos fosfato.

Se produce durante la fotosíntesis y la respiración celular, y es consumido por muchos enzimas en la catálisis de numerosos procesos químicos. Su fórmula es C10H16N5O13P3.

ATP COMO FUENTE DE ENERGÍA LIBRE EN LOS SISTEMAS VIVOS.

El acoplamiento entre las reacciones exergónicas que liberan energía al medio y endergónicas (con consumo de energía), en conjunto constituyen el metabolismo celular.

Las reacciones endergónicas se manifiestan durante los procesos anabólicos; de manera que, requieren que se le añade energía a los reactivos (sustratos o combustibles metabólicos), se le suma energía (contiene más energía libre que los reactivos). Por otro lado, durante las reacciones exergónicas se libera energía como resultado de los procesos químicos (ej. el catabolismo de macromoléculas). La energía libre se encuentra en un estado organizado, disponible para trabajo biológico útil.

En la célula son oxidadas las macromoléculas por una serie de reacciones químicas degradativas (catabolismo). Como productos del catabolismo se obtienen metabolitos simples y energía. Ambos son los precursores para la síntesis de los componentes celulares. Todo el conjunto de reacciones de síntesis se llama anabolismo. En el catabolismo (oxidación) se produce una liberación de electrones que son captados por moléculas transportadoras de electrones como el NAD+ (que al aceptar electrones se reduce a NADH). Por otra parte, la energía liberada queda retenida en su mayoría en el ATP.

La síntesis (anabolismo) de los compuestos celulares se realiza con los metabolitos simples, utilizando la energía contenida en el ATP y los electrones contenidos en el NADH, ya que éste es un proceso reductivo (toma electrones). El ATP es esa moneda de intercambio energético debido a su estructura química. Cuando se hidroliza libera mucha energía que va a ser captada por las enzimas que catalizan las reacciones de biosíntesis.

ESTRUCTURA DEL ATP . INESTABILIDAD Y FORMACIÓN DE HÍBRIDOS DE RESONANCIA


Molécula de ATP y su hidrólisis a ADP + Pi:

Donde °¬°°~° son los enlaces anhídrido de ácido, que son de alta energía. En la hidrólisis del ATP se está hidrolizando uno de esos enlaces anhídrido de ácido. Esto libera energía (7'7kcal/mol).

Es decir: ΔG = -7,7 kcal/mol "REACCIÓN EXERGÓNICA"

Así se comprende que el ATP tiene tendencia a hidrolizarse de forma natural y liberar energía.

Las razones químicas de esa tendencia son tres:

1.Energía de estabilización por resonancia: viene dada por la deslocalización electrónica, es decir, que debido a la distinta electronegatividad entre el P y el O, existe un desplazamiento de los electrones de los dobles enlaces hacia el O. En el enlace doble tienen cierto carácter de sencillo y viceversa. Pues bien, la energía de estabilización por resonancia es más alta en los productos de hidrólisis que en el ATP. Esto se debe fundamentalmente a que los electrones π (los puntos rojos en los O) de los oxígenos puente entre los P son fuertemente atraídos por los grupos fosfóricos.

La competencia por los electrones π crea una tensión en la molécula; ésta es evidentemente menor (o está ausente) en los productos de hidrólisis. Por lo tanto, hay mayor energía de estabilización por resonancia en los productos de hidrólisis.

2.Tensión eléctrica entre las cargas negativas vecinas existente en el ATP (las flechas entre los O de los Pi). Esa tensión es evidentemente menor en los productos de hidrólisis.

3.Solvatación: la tendencia natural es hacia una mayor solvatación. La energía de solvatación es mayor en los productos de hidrólisis que en el ATP.

En la célula existen muchos enlaces de alta energía, la mayoría de los cuales son enlaces fosfato. El ATP ocupa una posición intermedia entre los fosfatos de alta energía.

NADH y FADH2 COMO FUENTES DE PODER REDUCTOR.

La dinucleótido de nicotinamida adenina (abreviada NAD+ en su forma oxidada y NADH en su forma reducida) es una coenzima que contiene la vitamina B3 y cuya función principal es el intercambio de electrones e hidrogeniones en la producción de energía de todas las células.

El NAD+ interviene en múltiples reacciones metabólicas de óxido-reducción. Cuando una enzima oxida un substrato por deshidrogenación, los átomos de hidrógeno arrancados a dicho substrato son cedidos por la enzima al NAD+; éste actúa como agente oxidante al aceptar dos electrones (y un protón), quedando libre en el medio otro protón:

A-H2 + NAD+ → A + NADH+H+
Por tanto, el NADH es la forma reducida del NAD+, ya que posee dos electrones (y un protón) más. El NADH actúa como transportador de 2e- y 1H+, para acabar cediéndolos. En el catabolismo aerobio, el NADH cede sus electrones al complejo NADH-deshidrogenasa (el primer elemento de la cadena respiratoria) situado en la membrana interna de la mitocondria; en el catabolismo anaerobio, como en la fermentación láctica, el NADH cede sus electrones al ácido pirúvico que se reduce a ácido láctico.

El flavín adenín dinucleótido es un coenzima que interviene como dador o aceptor de electrones y protones (poder reductor) en reacciones metabólicas redox; su estado oxidado (FAD) se reduce a FADH2 al aceptar dos átomos de hidrógeno (cada uno formado por un electrón y un protón), según la siguiente reacción:

La función bioquímica general del FAD es oxidar los alcanos a alquenos, mientras que el NAD+ (un coenzima con simialr función) oxida los alcoholes a aldehídos o cetonas. Esto es debido a que la oxidación de un alcano (como el succinato) a un alqueno (como el fumarato) es suficiente exergónica como para reducir el FAD a FADH2, pero no para reducir el NAD+ a NADH.

La reoxidación del FADH2 (es decir, la liberación de los dos electrones y dos protones capturados) tiene lugar en la cadena respiratoria, lo que posibilita la formación de ATP (fosforilación oxidativa).

Muchas oxidorreductasas, denominadas flavoenzimas o flavoproteínas, requieren FAD como coenzima para oxidar los substratos. Pero en el enzima succinato deshidrogenasa, que oxida el succinato a fumarato en el ciclo de Krebs, el FAD es realmente un grupo prostético, ya que está unido fuerte y permanentemente al enzima mediante un enlace covalente.

http://es.wikipedia.org/wiki/Adenos%C3%ADn_trifosfato#Enlaces_externos
http://es.wikipedia.org/wiki/NADH
http://es.wikipedia.org/wiki/Flav%C3%ADn_aden%C3%ADn_dinucle%C3%B3tido

INTRODUCCIÓN A LA BIOENERGÉTICA.

La Bioenergética es la parte de la biología muy relacionada con la física, que se encarga del estudio de los procesos de absorción, transformación y entrega de energía en los sistemas biológicos. Se relaciona con la Termodinámica, en particular con el tema de la Energía Libre, en especial la Energía Libre de Gibbs. Los cambios en la energía libre de Gibbs ΔG nos dan una cuantificación de la factibilidad energética de una reacción química y pueden proveer de una predicción de si la reacción podrá suceder o no. La Bioenergética solo se interesa por los estados energéticos inicial y final de los componentes de una reacción química, los tiempos necesarios para que el cambio químico se lleve a cabo en general se desprecian.


TERMODINÁMICA.

La termodinámica es una rama de la física que estudia los efectos de los cambios de la temperatura, presión y volumen de los sistemas a un nivel macroscópico. También explica los procesos de intercambio de masa y energía térmica entre sistemas térmicos diferentes.En esencia estudia la circulación de la energía y cómo la energía infunde movimiento. Históricamente, la termodinámica se desarrolló a partir de la necesidad de aumentar la eficiencia de las primeras máquinas de vapor.

El punto de partida para la mayor parte de las consideraciones termodinámicas son las leyes de la termodinámica, que postulan que la energía puede ser intercambiada entre sistemas en forma de calor o trabajo. También se postula la existencia de una magnitud llamada entropía, que puede ser definida para cualquier sistema. En la termodinámica se estudian y clasifican las interacciones entre diversos sistemas, lo que lleva a definir conceptos como sistema termodinámico y su contorno. Un sistema termodinámico se caracteriza por sus propiedades, relacionadas entre sí mediante las ecuaciones de estado. Éstas se pueden combinar para expresar la energía interna y los potenciales termodinámicos, útiles para determinar las condiciones de equilibrio entre sistemas y los procesos espontáneos.

ENERGÍA LIBRE DE GIBBS.

En termodinámica, la energía libre de Gibbs (o energía libre) es un potencial termodinámico, es decir, una función de estado extensiva con unidades de energía, que da la condición de equilibrio y de espontaneidad para una reacción química (a presión y temperatura constantes).

La segunda ley de la termodinámica postula que una reacción química espontánea hace que la entropía del universo aumente, ΔSuniverso > 0, así mismo ΔSuniverso esta en función de ΔSsistema y ΔSalrededores. Por lo general sólo importa lo que ocurre en el sistema en estudio y; por otro lado el cálculo de ΔSalrededores puede ser complicado.

Por esta razón fue necesario otra función termodinámica, la energía libre de Gibbs, que sirva para calcular si una reacción ocurre de forma espontánea tomando en cuenta solo las variables del sistema.

TRABAJO BIOLÓGICO.

La FOTOSÍNTESIS realizada por las plantas verdes y la OXIDACIÓN de los alimentos efectuada por los animales, al proporcionar ENERGÍA para la realización de trabajo, son los elementos principales en un ciclo enorme de ENERGÍA BIOLÓGICA en nuestra Tierra.

Las UNIDADES MOLECULARES básicas en la organización de los sistemas de transformación de energía celular son las moléculas de ENZIMAS, que son proteínas especializadas capaces de catalizar las reacciones químicas específicas en la célula. Estas moléculas de enzimas están arregladas en grupos orientados en estructuras diferentes de la CÉLULA para proporcionar dirección a las transformaciones de energía que ellas catalizan.

La ENERGÍA es transformada de un tipo a otro en 3 grandes etapas durante su FLUJO a través del mundo biológico.

1- La 1ra ETAPA es la FOTOSÍNTESIS, la captura de la ENERGÍA SOLAR por el pigmento clorofila en las células de las plantas verdes y su transformación en ENERGÍA QUÍMICA, que se usa para construir carbohidratos y otras moléculas de alimentos a partir del CO2 y H2O.

2- La 2da ETAPA en el flujo de energía es la RESPIRACIÓN en el que la ENERGÍA QUÍMICA de las moléculas de alimentos se transforma en una clase de energía más útil durante la OXIDACIÓN en las células de animales.

3- En la 3ra ETAPA la ENERGÍA QUÍMICA recuperada la utilizan las células para realizar TRABAJO, ya sea dentro de las células o en el medio ambiente. El trabajo realizado puede ser el trabajo mecánico de la contracción muscular, el trabajo eléctrico, el trabajo osmótico, o el trabajo químico de crecimiento. Conforme se realizan estas funciones, la ENERGÍA FLUYE finalmente al MEDIO AMBIENTE en una forma disipada, menos útil.

No sólo fluye ENERGÍA entre los mundos de vegetales y de animales, sino también MASA. Durante la RESPIRACIÓN las células animales toman O2 de la atmósfera y luego descargan CO2. Las plantas verdes extraen CO2 y H2O de la atmósfera y descargan O2. Entonces hay ahí un CICLO de CO2, un CICLO de O2 y un CICLO de H2O entre los mundos de animales y plantas. El contenido de agua en la biosfera es muy grande, así como el contenido de O2. El contenido de CO2 en la atmósfera es más bien pequeño, solamente del orden de 0.03 por ciento. Hay así un balance entre la producción de CO2y la utilización en la biosfera. El mundo de las células fotosintéticas y el mundo de las células heterotróficas viven en SIMBIOSIS unas con otras, una simbiosis en el que tanto la masa y la energía son elementos componentes.

http://es.wikipedia.org/wiki/Bioenerg%C3%A9tica
http://es.wikipedia.org/wiki/Termodin%C3%A1mica
http://es.wikipedia.org/wiki/Energ%C3%ADa_libre_de_Gibbs
http://espanol.answers.yahoo.com/question/index?qid=20090203222903AAPscG1


domingo, 6 de diciembre de 2009

Cuestionario Final.

1.- ¿Qué es la vaporización?

A cualquier temperatura dada, cierto número de moléculas en un líquido tiene la suficiente energía cinética para escapar desde la superficie, a esto se le conoce como vaporización.
Es necesario energía (comúnmente en forma de calor) para pasar de líquido a gas, lo cual va acompañado por un incremento en el desorden.

2.- ¿Qué es la presión de vapor?

La presión de vapor de un líquido es la presión ejercida por su vapor cuando el estado líquido y gaseoso están en equilibrio. En ese equilibrio entre líquido-gas, la máxima presión del gas ejercidad a cierta temperatura, dará una costante de presión. Por lo tanto, la presión cambia con la temperatura.

3.- ¿Qué es el punto de ebullición?

Es la temperatura a la cual la presión de vapor de un líquido, es igual a la presión externa. El punto de ebullición normal es el punto de ebullición cuando la presión externa es de 1atm.
Se formarán burbujas en el seno del líquido. La presión de vapor dentro de la burbuja se debe a la presión de vapor del líquido. Cuando la presión de vapor llega a ser igual a la presión externa, la burbuja sube a la superficie del líquido y se revienta.

4.- ¿Qué es tensión superficial?

Es la cantidad de energía requerida para estirar o aumentar la superficie por unidad de área. Los líquidos formados por moléculas de fuerzas intermoleculares fuertes, también tienen tensiones superficiales altas.
5.- ¿Qué son los electrolitos?

Los electrólitos son compuestos que conducen la electricidad cuando están disueltos o fundidos. Una corriente eléctrica es un flujo de cargas.

6.- ¿Cómo se clasifican los electrolitos?

Los electrólitos pueden clasificarse como fuertes o débiles. En una solución de un electrólito fuerte, la mayor parte del soluto está formado por iones, por ejemplo el NaCl; sus soluciones conducen muy bien la electricidad, a menos, que estén muy diluidas. Sin embargo, las soluciones saturadas de electrólitos fuertes insolubles no conducen muy bien la electricidad, porque hay muy poco soluto disuelto. El sulfato de Bario BaSo4, cuya solubilidad es sólo 0.0002 g/100 ml de agua a 25ºC, es un ejemplo de electrólito fuerte insoluble.

7.- ¿Qué es una solución no electrolítica?

Si la solución de un compuesto no conduce una cantidad observable de electricidad, a éste se le llama no electrólito. En esta solución, el electrólito está en forma de molécula; no hay iones. El alcohol y el azúcar son ejemplos de no electrólitos.
8.- ¿Qué es una solución porcentual?

Las soluciones porcentuales son aquellas cuya medida es la cantidad de mililitros o gramos referidos a 100 ml de solución.

9.- ¿Qué es la molaridad?

La molaridad se define como el número de moles de soluto por litro de solución.

M=(n)/(V).

En donde M es la molaridad, n es el número de moles de soluto y V es el volumen de solución expresado en litros.

10.- ¿Qué es la fracción molar?

La fracción molar es una unidad química para expresar la concentración de soluto en una disolución. Nos expresa la proporción en que se encuentran los moles de soluto con respecto a los moles totales de disolución, que se calculan sumando los moles de soluto(s) y de disolvente.

11.- ¿Quiénes propusieron el modelo del mosaico fluido y cómo es éste?

J. Singery Garth Nicolson descubrieron un modelo de mosaico fluido, en el que la doble capa lipídica es el esqueleto aglutinante de la membrana, en el que se encuentran asociadas o incluidas las proteínas que interactúan entre si y con los lípidos, sin perder la capacidad de moverse lentamente en la fase lipídica fluida. Además, las cadenas de ácidos grasos de los fosfolípidos y los residuos de aminoácidos no polares de las proteínas son mantenidos sin contacto con el agua; mientras que, los grupos polares e iónicos de las proteínas, lípidos y carbohidratos de la membrana están en contacto con el agua.

12.- ¿El modelo, qué tipo de proteínas propone?
El modelo contempla dos categorías de proteínas de membrana: periféricas (se ubican en la parte más superficial de la membrana) e, integrales (algunas abarcan todo el espesor de la mebrana y sobresalen hacia una o ambas superficies de la doble capa fosfolipídica).

13.- Tipos de transportes mediados por transportadores.

Existen al menos dos mecanismos de transporte mediados por transportadores; uno que promueve la difusión facilitada, el transportador ayuda a la molécula a lo largo de la dirección en que esa molécula se movería en forma corriente. En el transporte activo, una sustancia puede continuar acumulándose en una región en la que ya existe en una concentración mayor, sólo si se suministra energía al sistema transportador en forma continua desde el metabolismo. La energía metabólica dirige al transporte activo.

14.- ¿Cómo es el movimiento de la célula por citosis?

Las sustancias pueden traspasar la membrana en el interior de vesículas, que son receptáculos hechas de parte de la membrana misma. Cuando los materiales son incorporados a la célula envueltos en una membrana vesiculosa, el proceso se denomina endocitosis; si los materiales son descargados en vesículas para ser excretados, a este proceso se le conoce como exocitosis.
15.- ¿Qué es el potencial de membrana?

Dentro de la membrana de todas las fibras nerviosas se encuentra un potencial eléctrico de aproximadamente -90 milivolts. Que se llama potencial de membrana. Lo causan las diferencias de concentración iónicas a través de la membrana celular. La concentración de iones potasio (K+) en el interior de la membrana es muy elevada en comparación con su concentración en el exterior. Esta diferencia de concentración hace que escapen iones potasio de carga positiva hacia el exterior de la fibras nerviosas (axones), y dejan en el interior moléculas de proteínas de carga negativa que no pueden salir, con lo que crea electronegatividad en el interior.


Potencial de mebrana


Dentro de la membrana de todas las fibras nerviosas se encuentra un potencial eléctrico de aproximadamente -90 milivolts. Que se llama potencial de membrana. Lo causan las diferencias de concentración iónicas a través de la membrana celular. La concentración de iones potasio (K+) en el interior de la membrana es muy elevada en comparación con su concentración en el exterior. Esta diferencia de concentración hace que escapen iones potasio de carga positiva hacia el exterior de la fibras nerviosas (axones), y dejan en el interior moléculas de proteínas de carga negativa que no pueden salir, con lo que crea electronegatividad en el interior.

La membrana nerviosa también tiene una concentración elevada de iones de sodio en el exterior, pero una concentración baja en el interior. El potencial de membrana no es exclusivo de las células nerviosas, puesto que tales potenciales se encuentran presentes en todos los tipos de células, aunque varía la magnitud del voltaje entre -15 y -100 milivolts. En el caso de las células excitables, (neuronas y células musculares) el potencial de membrana se conoce como potencial en reposo, dado que es objeto de un cambio muy drástico

La membrana del axón cuenta con la misma bomba de sodio-potasio que la de las demás membranas celulares del cuerpo. La bomba transporta iones de sodio desde el interior del axón hacia el exterior del mismo, en tanto que transporta iones potasio hacia el interior. El efecto final de estos procesos es que la concentración de sodio en el exterior es de 142 meq por litro, pero en el interior es de sólo 14 meq por litro. En el caso del potasio, la diferencia de concentración es lo contrario; con una concentración de 140 meq dentro y de 4 meq en el exterior (“meq= miliequivalentes”, concentración milimolar multiplicada por la valencia del ión). Como resultado de esta distribución desigual de cargas entre el interior y el exterior de las células, cada célula se comporta como una diminuta pila, en el que el polo positivo está situado fuera de la membrana plasmática y el polo negativo en el interior. La magnitud de esta diferencia de carga se mide en voltaje. Para determinar el voltaje de la membrana plasmática, se inserta un pequeño electrodo de vidrio en el citoplasma de la célula, mientras que otro electrodo se coloca en el líquido extracelular, y cada uno se conecta a un volímetro, instrumento que permite evaluar la diferencia de cargas entre estos dos puntos. Este pequeño voltaje tiene mucha importancia en procesos fisiológicos como la contracción muscular, la regulación del latido cardiaco y la generación de impulsos nerviosos.

La membrana del axón en reposo es muy impermeable a los iones de sodio pero muy permeable a los iones de potasio. Por lo tanto, los iones de potasio muy concentrados dentro del axón siempre tratan de salir de la fibra, y muchos lo logran. Como los iones potasio tienen carga negativa, su pérdida hacia el exterior produce carga positiva en ese sitio. Dentro de la fibra se encuentran numerosas moléculas proteicas de carga negativa que no pueden escapar hacia el exterior y se quedan dentro. Por ello, el interior de la fibra se vuelve muy negativo por el déficit de iones de potasio y el exceso de proteínas de carga negativa, en consecuencia, el potencial de membrana de la fibra nerviosa bajo condiciones de reposo es de aproximadamente -90 milivolts: la negatividad se encuentra dentro de la fibra.

La bomba Na+/K+ ayudan a contrarrestar la fugas de iones y manteniendo así el potencial de membrana, dado que saca 3 Na+ e introduce 2 K+ a la célula; tiene el efecto de contribuir a la carga intracelular negativa. Este efecto electrogénico de las bombas añade aproximadamente 3 milivolts al potencial de membrana. Como resultado de estas acciones, una célula real tiene:

1.- Una concentración de Na+ y de K+ relativamente constante.
2.- Un potencial de membrana constante (en ausencia de estimulación) en los nervios y músculos de entre -65 y -85 milivolts.

El voltaje que se desarrollará a través de la membrana cuando es selectivamente permeable sólo a un ión univalente positivo se puede calcular con la siguiente ecuación, la ecuación de Nernst, Cabe señalar que esta ecuación es válida a una temperatura de 37 ºC.

Milivolts de potencial de membrana

=-61*log (concentración dentro/ concentración fuera)

Para el potasio:

=-61*log(140/4)=-94

El verdadero valor es de aproximadamente -90 milivolts que es ligeramente menor que los -94 milivolts encontrados, esto, porque la membrana es ligeramente permeable a los iones sodio, que llevan cargas positivas hacia el interior y neutralizan una cantidad pequeña de la negatividad intracelular.

Bibliografía:

Guyton. C, Arthur. Fisiología Humana. Interamericana Mc Graw Hill. 6a edición. 1987.Tr. Santiago Sapiña Renard. México. Cap. 6.

Karp, Gerald. Biología Celular. Mc Graw Hill. 2a edición. 1992. México. 215-225.

Fox. Stuart, Ira. Fisiología Humana. Mc Graw-Hill. 7ª edición. 2004 pp. 141-144.